
 病毒服务
 细胞服务
 基因服务
 质粒
 病毒
 细胞
 试剂
AAV-SP-C-iCre
1. SP-C 启动子介绍
肺脏是一个由超过40种不同类型的细胞构成器官,其中肺泡上皮细胞又主要分为I型(Type I Alveolar Epithelial Cells ,ATI)和(Type II Alveolar Epithelial Cells II,ATII)细胞,ATII细胞尽管仅占肺泡表面积的约5%,却承担着不可替代的角色。II型(ATII)细胞是肺泡表面活性剂的唯一合成和分泌来源,同时也是肺泡上皮再生的前体细胞,在肺损伤后分化为ATI细胞以修复受损的气血屏障。因此,ATII细胞成为了众多肺部疾病基因治疗的关键靶点。
肺表面活性蛋白(Surfactant Protein,SP)主要包括SP-A、SP-B、SP-C和SP-D四种,它们在肺内的表达分布存在显著差异,肺表面活性蛋白C(Surfactant Protein C,SP-C)是四种肺表面活性蛋白中唯一呈现肺泡II型上皮细胞(Type II Alveolar Epithelial Cells,ATII)严格限制性表达的蛋白,使得SP-C启动子成为AAV病毒在II型(ATII)细胞特异性表达的主要启动子,主要由近端启动子区(-318 bp至+18 bp)内的转录因子结合位点决定,其中甲状腺转录因子-1(TTF-1),核因子I(NFI)和GATA结合蛋白6(GATA-6)的结合位点是核心调控因子。
2. iCre酶介绍
iCre(codon-improved Cre recombinase)是对噬菌体P1来源的Cre重组酶进行密码子优化改造的升级版本。传统的Cre重组酶在原核宿主中进化而来,其编码序列含有较高的CpG二核苷酸含量,在哺乳动物细胞中易引发表观遗传沉默,导致表达效率低下和重组活性不稳定。iCre通过将编码序列调整为哺乳动物偏好的密码子使用频率,在保持氨基酸序列和酶活性不变的前提下,显著提高了重组酶在哺乳动物细胞中的表达水平、mRNA稳定性和翻译效率,同时降低了CpG含量以减少表观遗传沉默风险。自2002年首次报道以来,iCre已广泛应用于转基因小鼠、斑马鱼等模式生物的构建,成为条件性基因敲除和谱系示踪研究中不可或缺的工具。
Cre重组酶是来源于噬菌体P1的I型拓扑异构酶,由343个氨基酸组成,分子量约38 kDa。该酶能够识别并结合34 bp的LoxP位点,介导两个LoxP位点之间的DNA重组反应。LoxP位点由两个13 bp的反向重复序列(作为Cre蛋白的结合位点)和一个8 bp的核心间隔区(决定重组的定向性)组成。
Cre重组酶无需ATP或其他能量辅助因子即可催化重组反应,其作用机制包括四个关键步骤:两个Cre蛋白分子分别结合两个LoxP位点的反向重复序列;通过蛋白-蛋白相互作用将两个LoxP位点靠近;在核心间隔区发生DNA链的切割和交换;完成重组并释放产物。根据两个LoxP位点的相对方向,Cre介导的重组可导致三种结果:同向LoxP之间的序列被删除、反向LoxP之间的序列发生倒位、位于不同DNA分子上的LoxP之间发生易位。
表1 不同Cre酶参数比对
| 特点 | Cre | iCre | CreER2 | MerCreMer |
| 全称 | Cre recombinase | codon-improved Cre | Cre-ERT2 fusion | Mer-Cre-Mer fusion |
| 核心改造 | 原始噬菌体序列 | 密码子优化,降低CpG | C端融合ERT2 | N端和C端各融合Mer |
| 时空控制 | 无(组成型) | 无(组成型) | 他莫昔芬诱导型 | 他莫昔芬诱导型 |
| 本底渗透表达 | 不适用 | 不适用 | 中等 | 更低(双重锚定) |
| 表达效率 | 低 | 高 | 取决于设计 | 取决于设计 |
| 适用实验 | 细菌/体外基础实验 | 组织特异性敲除、谱系示踪 | 时间可控的基因删除 | 对背景活性敏感的实验 |
病毒注射方式(注射量:1 × 10¹¹vg/小鼠)
一、传统滴鼻法
(1)、实验动物称重,使用麻醉剂(异氟烷、氯胺酮、赛拉嗪混合液等)或者小动物麻醉机进行麻醉,置于仰卧位。
(2)、用惯用手捏住小鼠颈背部皮肤,非惯用手拇指轻压下颌使其张口,食指轻压鼻梁,将头部以约45°角固定,确保气道通畅开放,避免压迫颈部影响呼吸.
(3)、用带滤芯的移液枪头吸取AAV病毒液,将枪头垂直对准小鼠一侧鼻孔(距鼻孔约2–3 mm),缓慢滴下3–5 μL液滴,待液体被完全吸入后再滴下一滴。每侧鼻孔分次滴入总剂量的一半(通常每侧20 μL,每次3–5 μL,间隔约30秒)
(4)、滴鼻结束后,将小鼠置于37°C加热垫上的空恢复笼中,持续观察至少10分钟直至完全清醒恢复。
传统滴鼻法的原理是利用小鼠的自主呼吸将液滴吸入呼吸道。但是由于小鼠在仰卧位时呼吸道解剖结构的特点,液滴容易经鼻咽部进入食管而被吞咽,导致实际进入肺部的载体剂量显著减少。
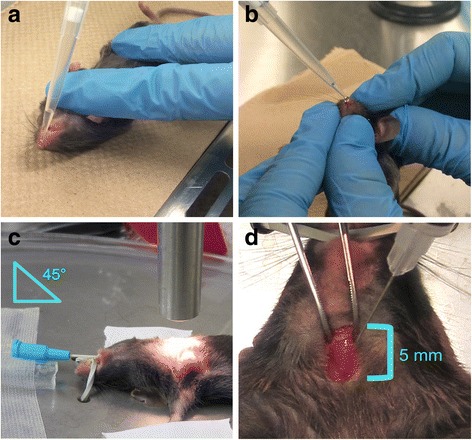
a.传统滴鼻法;b.改良滴鼻法;c.气管插管法;d.气管内注射法
(Adapted from [Santry LA, 2017])
二、改良滴鼻法
(1)实验动物称重,使用麻醉剂(异氟烷、氯胺酮、赛拉嗪混合液等)或者小动物麻醉机进行麻醉,置于仰卧位。
(2)取出麻醉小鼠后,将小鼠身体呈45–60°倾斜角(较传统法略大),以重力辅助液体流向气管方向。拇指轻压下颌使其微张,食指轻压鼻梁,但避免过度后仰以防止气管扭曲。(需2人配合完成)
(3)第一轮给药:操作者A将总剂量的一半(如40 μL分两次,每次20 μL)进行滴鼻。每侧鼻孔采用3–5 μL/次的微量分次方案,每滴间隔30秒以上,确保每滴液体完全吸入后再滴下一滴。
第二轮给药:第一轮完成后将小鼠放回恢复笼,待其完全清醒并恢复活动(约15–20分钟)后,再次麻醉进行第二轮滴鼻,操作同第一轮。
(4)滴鼻结束后,将小鼠置于37°C加热垫上的空恢复笼中,持续观察至少10分钟直至完全清醒恢复。
改良滴鼻法在传统方法基础上进行了两处关键改进:其一,小鼠在给药时保持45°倾斜体位(头朝上);其二,用手指轻轻捏住小鼠嘴巴,防止经口呼吸和吞咽。这两项改进旨在促进液体经鼻吸入并进入下呼吸道,同时最大限度地减少经口吞咽导致的载体丢失。
2.3 气管插管法
(1)实验动物称重,使用麻醉剂(异氟烷、氯胺酮、赛拉嗪混合液等)或者小动物麻醉机进行麻醉,将小鼠仰卧位固定于操作台,头部尽量后仰以拉直口腔-咽部-气管通路。用缝合线穿过上门齿并向后牵拉固定,使口腔张开。
(2)喉镜叶片轻轻压下舌根部,在光源辅助下观察到会厌软骨和声门裂。将PE-10导管前端蘸取少量无菌生理盐水润滑,沿口腔中线轻柔插入,当导管前端通过声门进入气管时,可观察到导管内液面随呼吸节律上下波动,此为确认导管位置正确的关键体征,确认位置后,用胶带或缝线将导管固定于小鼠口角。
(3)用微量注射器吸取AAV病毒液(推荐按3 μL/g体重计算注射体积),连接至导管外口,缓慢推注(约10–15秒完成)。推注完毕后,立即用1 mL无针注射器连接导管,注入0.2 mL空气,重复2–3次,以减少AAV在导管内的残留。
(4)注射完成后拔出导管,立即将小鼠从操作台取下,侧卧于加热垫上。用镊子轻张口以利呼吸通畅,持续观察直至呼吸平稳、完全清醒后放回饲养笼。
三、气管内注射法
(1)实验动物称重,使用麻醉剂(异氟烷、氯胺酮、赛拉嗪混合液等)或者小动物麻醉机进行麻醉。(2)碘伏和酒精棉球交替擦拭颈部腹侧正中区域,共2分钟,在喉结下方约0.5 cm处做约0.5–1 cm纵行皮肤切口,用止血钳或镊子钝性分离皮下组织和颈前肌群,暴露气管(呈半透明环状软骨结构)。(3)将25G蝴蝶针或胰岛素注射器(含AAV病毒液)沿气管环间隙斜向刺入气管腔内,进针角度约30–45°。判断针尖进入气管的指征:注射器内可观察到液柱随呼吸节律上下波动,或连接注射器回抽可见气泡。缓慢推注病毒液(推荐按3 μL/g体重计算体积),约30秒内完成。(4)注射完毕后快速拔出针头,用无菌纱布轻压穿刺点止血(通常1–2分钟即可止血)。皮肤切口用氰基丙烯酸酯皮肤粘合剂粘合,或用5-0缝线缝合1–2针。(5)小鼠置于37°C加热垫上苏醒,给予抗生素(如头孢类)预防感染,术后前2天每日检查切口情况
参考文献:
Keaveney MK, Rahsepar B, Tseng HA, et al. CaMKIIα-Positive Interneurons Identified via a microRNA-Based Viral Gene Targeting Strategy. J Neurosci. 2020;40(50):9576-9588. doi:10.1523/JNEUROSCI.2570-19.2020
Umpierre AD, Bystrom LL, Ying Y, Liu YU, Worrell G, Wu LJ. Microglial calcium signaling is attuned to neuronal activity in awake mice. Elife. 2020;9:e56502. Published 2020 Jul 27. doi:10.7554/eLife.56502
Sun F, Zhou J, Dai B, et al. Next-generation GRAB sensors for monitoring dopaminergic activity in vivo. Nat Methods. 2020;17(11):1156-1166. doi:10.1038/s41592-020-00981-9
Dana H, Mohar B, Sun Y, et al. Sensitive red protein calcium indicators for imaging neural activity. Elife. 2016;5:e12727. Published 2016 Mar 24. doi:10.7554/eLife.12727
Dana H, Sun Y, Mohar B, et al. High-performance calcium sensors for imaging activity in neuronal populations and microcompartments. Nat Methods. 2019;16(7):649-657. doi:10.1038/s41592-019-0435-6
Liang Z, Ma Y, Watson GDR, Zhang N. Simultaneous GCaMP6-based fiber photometry and fMRI in rats. J Neurosci Methods. 2017;289:31-38. doi:10.1016/j.jneumeth.2017.07.002
Ouzounov DG, Wang T, Wu C, Xu C. GCaMP6 ΔF/F dependence on the excitation wavelength in 3-photon and 2-photon microscopy of mouse brain activity. Biomed Opt Express. 2019;10(7):3343-3352. Published 2019 Jun 14. doi:10.1364/BOE.10.003343
Dana H, Chen TW, Hu A, et al. Thy1-GCaMP6 transgenic mice for neuronal population imaging in vivo. PLoS One. 2014;9(9):e108697. Published 2014 Sep 24. doi:10.1371/journal.pone.0108697
Ding J, Luo AF, Hu L, Wang D, Shao F. Structural basis of the ultrasensitive calcium indicator GCaMP6. Sci China Life Sci. 2014;57(3):269-274. doi:10.1007/s11427-013-4599-5
Steinmetz NA, Buetfering C, Lecoq J, et al. Aberrant Cortical Activity in Multiple GCaMP6-Expressing Transgenic Mouse Lines. eNeuro. 2017;4(5):ENEURO.0207-17.2017. Published 2017 Sep 6. doi:10.1523/ENEURO.0207-17.2017
Chen YC, Bullock B, Ogbeh DI, et al. In vitro modeling of human dorsal root ganglion neurons for GCaMP6-based calcium imaging of sensory responses to HSV-1 infection. J Virol Methods. 2026;339:115264. doi:10.1016/j.jviromet.2025.115264
Hussain S, Sedlacek M, Cui R, et al. Spontaneous calcium transients in hair cell stereocilia. Sci Rep. 2025;15(1):33660. Published 2025 Sep 29. doi:10.1038/s41598-025-17976-1
Mallmann RT, Gonzalez Mantuano MC, Polomski K, Knerr J, Klugbauer N. Small molecule agonist TPC2-A1-N increases intracellular Ca2+ independent of two-pore channels. J Biol Chem. 2025;301(9):110576. doi:10.1016/j.jbc.2025.110576